

オルガネラ代謝連関がミトコンドリア融合を制御する新たな仕組みを発見
―PI(3,4)P₂を含むゴルジ体由来小胞がミトコンドリア融合を促進―
- プレスリリース
2026年10月9日
東京大学
発表のポイント
- 全7種類のホスホイノシタイド(PIPs)を比較した結果、PI(3,4)P₂のみがミトコンドリア融合を促進することを見出しました。
- ゴルジ体由来小胞に含まれるリン脂質PI(3,4)P₂がミトコンドリアの融合部位に集まり、ミトコンドリア融合を促進することを明らかにしました。
- PI(3,4)P₂を産生するPI3K-C2α/βを心筋細胞で欠損させると、ミトコンドリアの断片化と重篤な心機能障害が生じました。本成果は、オルガネラ間の脂質代謝連関がミトコンドリアの形態と機能を制御するという新たな概念を提示するものです。
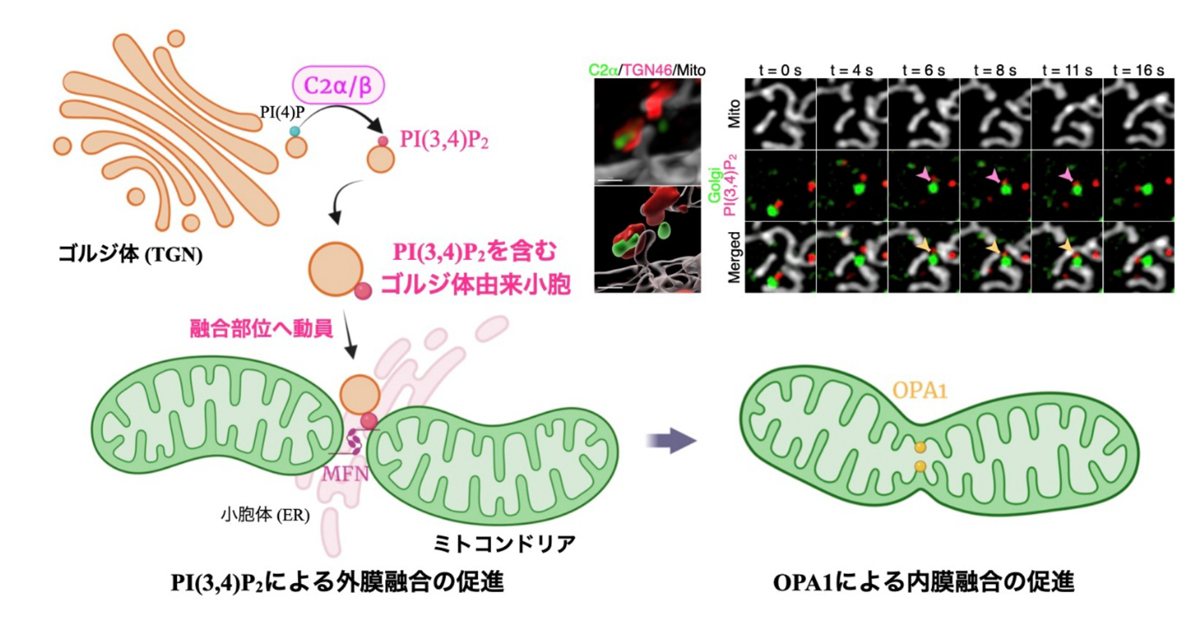
概要
東京大学先端科学技術研究センターの安藝翔特任助教(研究当時)、大澤毅准教授(研究当時)、英国ケンブリッジ大学MRCミトコンドリア生物学ユニットのMayuko Segawa博士、Julien Prudent博士らによる国際共同研究グループは、ゴルジ体由来小胞に含まれるリン脂質PI(3,4)P₂(注1)がミトコンドリア融合を促進する新たな仕組みを明らかにしました。
ミトコンドリア(注2)は、細胞内で絶えず融合と分裂を繰り返しながらその形態を変化させ、細胞の恒常性を維持しています。これまで、ミトコンドリアの分裂には小胞体やリソソーム、ゴルジ体由来小胞など他のオルガネラ(注3)が関与することが知られていました。一方、ミトコンドリアの融合が他のオルガネラとの連携によってどのように制御されるのかは十分に分かっていませんでした。
本研究では、PI(3,4)P₂を含むゴルジ体由来小胞が、ミトコンドリア融合タンパク質MFN1/2(注4)と小胞体によって規定される融合部位へ動員され、ミトコンドリア融合を促進することを明らかにしました。さらに、PI(4)P(注5)を主に含むゴルジ体由来小胞はミトコンドリアの分裂部位へ、PI(3,4)P₂を含む小胞は融合部位へ選択的に動員されることから、ゴルジ体由来小胞が、そのリン脂質組成に応じてミトコンドリアの融合と分裂を使い分けて制御することを見出しました。また、PI(3,4)P₂を産生するPI3K-C2α/β(注6)を心筋細胞で欠損させたマウスでは、ミトコンドリアの断片化と重篤な心機能障害が認められました。これらの成果は、オルガネラ間の脂質代謝連関がミトコンドリアの形態と機能を制御する新たな仕組みを示すものであり、ミトコンドリアの恒常性維持機構の理解につながることが期待されます。
本研究成果は、2026年10月8日(米国東部夏時間)に国際科学誌「Science」に掲載されました。
発表内容
ミトコンドリアは、細胞内でエネルギー産生や代謝などを担うオルガネラで、絶えず「融合」と「分裂」を繰り返しながらその形態と機能を維持しています。これまで、ミトコンドリアの分裂には小胞体やリソソーム、ゴルジ体由来小胞など複数のオルガネラが関与することが知られていました。一方、融合には外膜の融合を担うMFN1/2や内膜の融合を担うOPA1などのタンパク質が関与するものの、他のオルガネラとの連携によって融合がどのように制御されるのかは十分に分かっていませんでした。
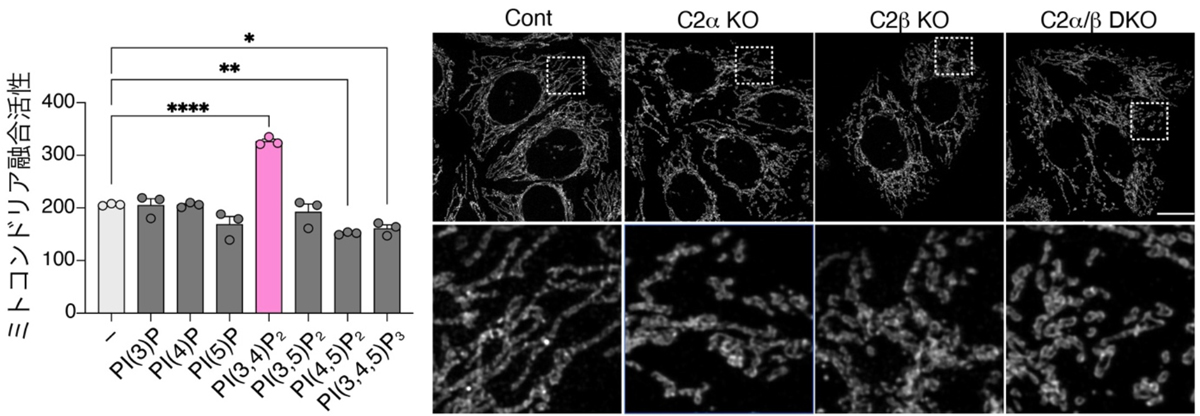
我々は、オルガネラ膜に存在するリン脂質ホスホイノシタイド(PIPs)とミトコンドリア融合との関係を解析しました。PIPsはリン酸化される位置や数の違いによって7種類に分類され、それぞれ異なる細胞内分布を示し、膜輸送や膜動態、オルガネラ機能を制御しています。そこで、7種類すべてのPIPsについてミトコンドリア融合に対する作用を比較したところ、PI(3,4)P₂のみが融合を促進することを見出しました。さらに、PI(3,4)P₂を産生するPI3K-C2α/βを欠損させると、複数の細胞種でミトコンドリアが著しく断片化しました。この断片化は分裂の亢進ではなく融合の低下によるものであり、低下した融合活性はPI(3,4)P₂の添加によって回復しました。これらの結果から、7種類のPIPsの中でもPI(3,4)P₂が選択的にミトコンドリア融合を促進することが明らかになりました(図1)。
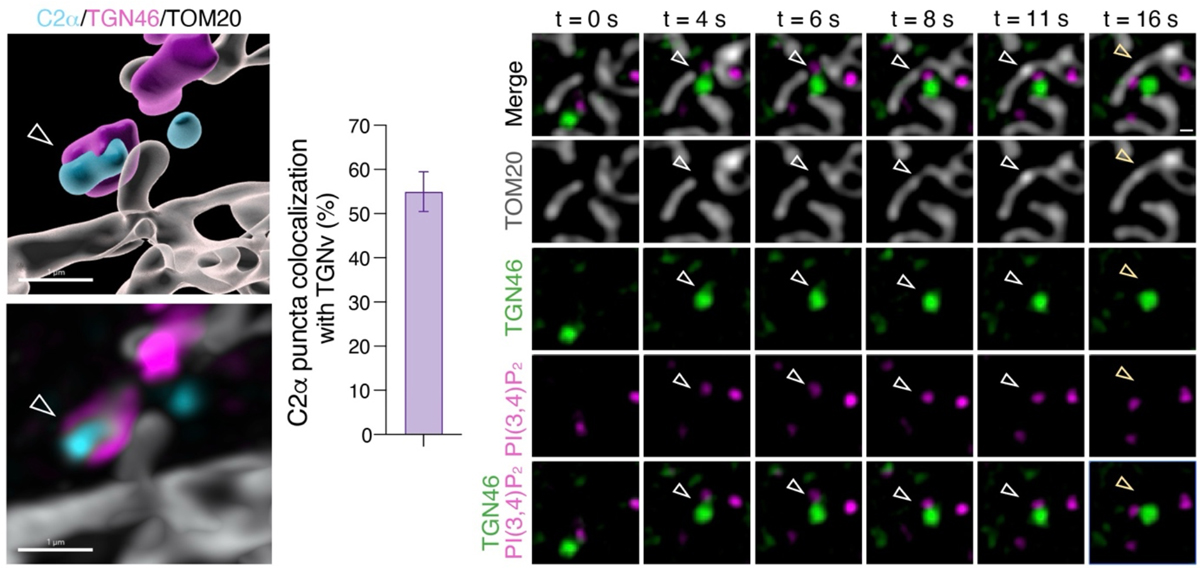
次に我々は、PI(3,4)P₂が細胞内でミトコンドリア融合を促進する仕組みを解析しました。ライブセル超解像イメージングを用いてミトコンドリア融合の瞬間を観察したところ、PI(3,4)P₂を含むゴルジ体由来小胞がミトコンドリア融合部位へ動員されることを発見しました(図2)。
さらに、融合部位に集まる分子やオルガネラを時間的に解析したところ、小胞体が融合部位に存在し、MFN1/2が集合した後にPI(3,4)P₂を含むゴルジ体由来小胞が動員され、融合が進行することが分かりました。PI3K-C2α/βを欠損した細胞では、MFN1/2がミトコンドリア同士の接触部位に集積しているにもかかわらず、その後の融合が進行しないことから、PI(3,4)P₂を含むゴルジ体由来小胞がMFN1/2の集合より後の段階で融合を促進することが示されました。さらに、ゴルジ体由来小胞に含まれるPIPsの組成を解析したところ、PI(4)Pを主に含む小胞はミトコンドリアの分裂部位へ、PI(3,4)P₂を含む小胞は融合部位へ選択的に動員されました。同じゴルジ体に由来する小胞であっても、含まれる脂質の違いによってミトコンドリアの「分裂」と「融合」という相反する膜動態を選択的に制御することが明らかになりました。
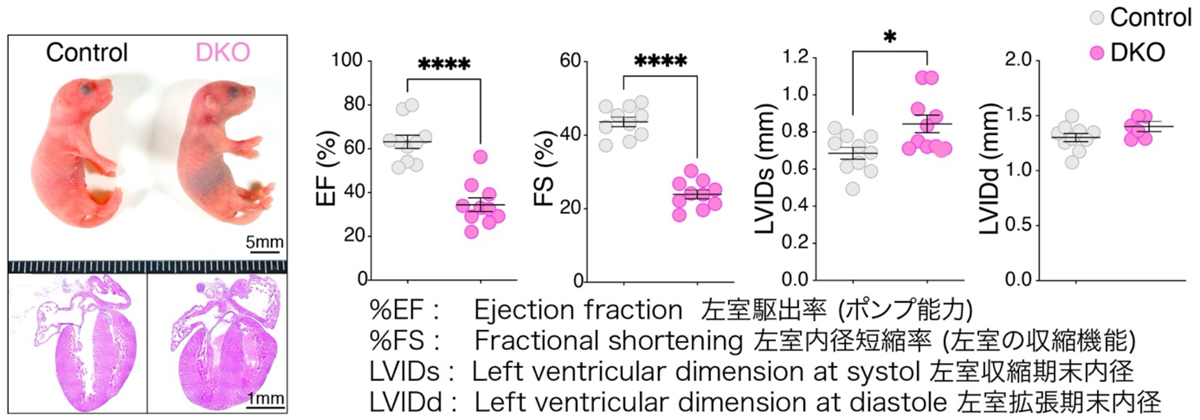
最後に、PI3K-C2α/βを心筋細胞で欠損させたマウスを解析したところ、心筋ミトコンドリアの著しい断片化が認められ、さらに重篤な心機能障害を呈しました。このことから、PI3K-C2α/βを介したPI(3,4)P₂産生とミトコンドリア融合が、生体内におけるミトコンドリアの恒常性と心機能の維持にも重要であることが示されました(図3)。
本研究により、小胞体、ミトコンドリア、ゴルジ体由来小胞が連携し、局所的な脂質代謝を介してミトコンドリア融合を制御する新たな仕組みが明らかになりました。本成果は、オルガネラ間の脂質代謝連関がミトコンドリアの形態と機能を制御するという新たな概念を提示するものであり、ミトコンドリアの恒常性維持機構や、その破綻に伴う病態の理解につながることが期待されます。
なお、本研究は本学の倫理審査委員会の承認のもと実施されました。
発表者・研究者等情報
東京大学
先端科学技術研究センター ニュートリオミクス・腫瘍学分野
大澤 毅 准教授(兼:同大学院工学系研究科科学生命工学専攻、同大学院理学系研究科生物科学専攻)
(現:東京科学大学大学院医歯学総合研究科 プロジェクト准教授)
安藝 翔 特任助教(研究当時)兼:同大学院工学系研究科化学生命工学専攻(研究当時)
菅谷 麻希 研究員(研究当時)
大学院工学系研究科 化学生命工学専攻
平林 祐介 准教授
中村 航規 特任研究員
大学院医学系研究科
小山-本田 郁子 准教授
大阪大学 ヒューマン・メタバース疾患研究拠点(WPI-PRIMe)
森田 斉弘 特任教授
勝村 早恵 招へい准教授
英国ケンブリッジ大学
MRC Mitochondrial Biology Unit
Mayuko Segawa 博士
Vincent Anton 博士
Suvagata R. Chowdhury 博士
Dane M. Wolf 博士
Joe Ganellin 博士
Mark Johnson 博士
Julien Prudent 博士
東京薬科大学 生命科学部
長島 駿 講師
学習院大学 理学部 生命科学科
柳 茂 教授
椎葉 一心 助教
順天堂大学 大学院医学研究科 難治性疾患診断・治療学
杉浦 歩 准教授
東京都健康長寿医療センター研究所
藤田 恭則 研究員
大澤 郁朗 研究副部長
金沢大学 医薬保健研究域 医学系 血管分子生理学
内藤 尚道 教授
吉岡 和晃 准教授
多久和 陽 名誉教授
論文情報
- 雑誌名:
- 「Science」
- 題 名:
- Golgi-derived vesicles containing PI(3,4)P2 drive mitochondrial fusion
- 著者名:
- Sho Aki†, Mayuko Segawa†, Vincent Anton‡, Suvagata R. Chowdhury‡, Shun Nagashima, Isshin Shiiba, Dane M. Wolf, Ikuko Koyama-Honda, Ayumu Sugiura, Joe Ganellin, Mark Johnson, Sakie Katsumura, Maki Sugaya, Yasunori Fujita, Koki Nakamura, Kazuaki Yoshioka, Hisamichi Naito, Yoh Takuwa, Ikuroh Ohsawa, Yusuke Hirabayashi, Shigeru Yanagi, Masahiro Morita, Tsuyoshi Osawa*, Julien Prudent*
研究助成
本研究は、日本学術振興会(JSPS)科研費 新学術領域研究(20H04834)、学術変革領域研究A(25H01339、25A304)、基盤研究B(26K02274)、学術変革領域研究B(23H03861)、基盤研究C(20K07260, 24K09451、24K10279)、挑戦的研究(萌芽)(19K22553、21K19399、23K18234)の助成、ならびに文部科学省 科研費 AdAMS(22H04922)、SGH財団、キヤノン財団、武田科学振興財団、高松宮妃癌研究基金、先進医薬研究振興財団、国立研究開発法人 科学技術振興機構(JST)創発的研究支援事業(JPMJFR2306)、国立研究開発法人日本医療研究開発機構(AMED)次世代がん医療創生研究事業(P-CREATE)「低pH がん微小環境のネットワーク撃滅を実現する標的分子群の同定と治療法の開発(JP17cm0106221)」、革新的がん医療実用化研究事業「がん微小環境の分子基盤に基づいた革新的がん治療薬の開発(JP19ck0106362)」の支援を受けて実施されました。
さらに本研究は、東京医科歯科大学 難治疾患研究所、金沢大学 がん進展制御研究所の共同研究拠点事業、および北海道大学 遺伝子病制御研究所の共同利用・共同研究拠点事業の一部支援も受けています。
用語解説
- (注1)PI(3,4)P₂[ホスファチジルイノシトール3,4-二リン酸]
細胞膜やオルガネラ膜を構成するリン脂質の一種であるホスホイノシタイド(PIPs)の一つ。細胞内の特定の場所で産生され、膜輸送や細胞内シグナルなどの制御に関わります。本研究では、PI(3,4)P₂を含むゴルジ体由来小胞がミトコンドリア融合を促進することを明らかにしました。 - (注2)ミトコンドリア
細胞内でエネルギー産生を担うオルガネラ。融合と分裂を繰り返して形態を変化させ、エネルギー代謝や細胞死など多様な細胞機能を制御しています。 - (注3)オルガネラ
ミトコンドリア、ゴルジ体、小胞体、リソソームなど、細胞内でそれぞれ固有の機能を担う細胞内小器官。 - (注4)MFN1/2(Mitofusin 1/2)
ミトコンドリア外膜に存在するタンパク質。隣接するミトコンドリア同士の外膜融合を進める中心的な役割を担います。 - (注5)PI(4)P[ホスファチジルイノシトール4-リン酸]
ホスホイノシタイドの一種で、ゴルジ体などに多く存在します。PI(4)Pを含むゴルジ体由来小胞はミトコンドリア分裂への関与が知られており、本研究では、PI(4)Pを主に含む小胞とPI(3,4)P₂を含む小胞が、それぞれミトコンドリアの分裂と融合に選択的に関与することを明らかにしました。 - (注6)PI3K-C2α/β
Class II PI3キナーゼに属する脂質リン酸化酵素。本研究では、PI3K-C2α/βによるPI(3,4)P₂の産生がミトコンドリア融合とその形態維持に重要であることを初めて明らかにしました。
問合せ先
東京科学大学大学院医歯学総合研究科
プロジェクト准教授 大澤 毅(おおさわ つよし)
