

微生物ロドプシンを「共通番号」で読み解く
―多様なロドプシンを比較するMOナンバリングシステムを開発―
- プレスリリース
2026年11月6日
東京大学
科学技術振興機構(JST)
発表のポイント
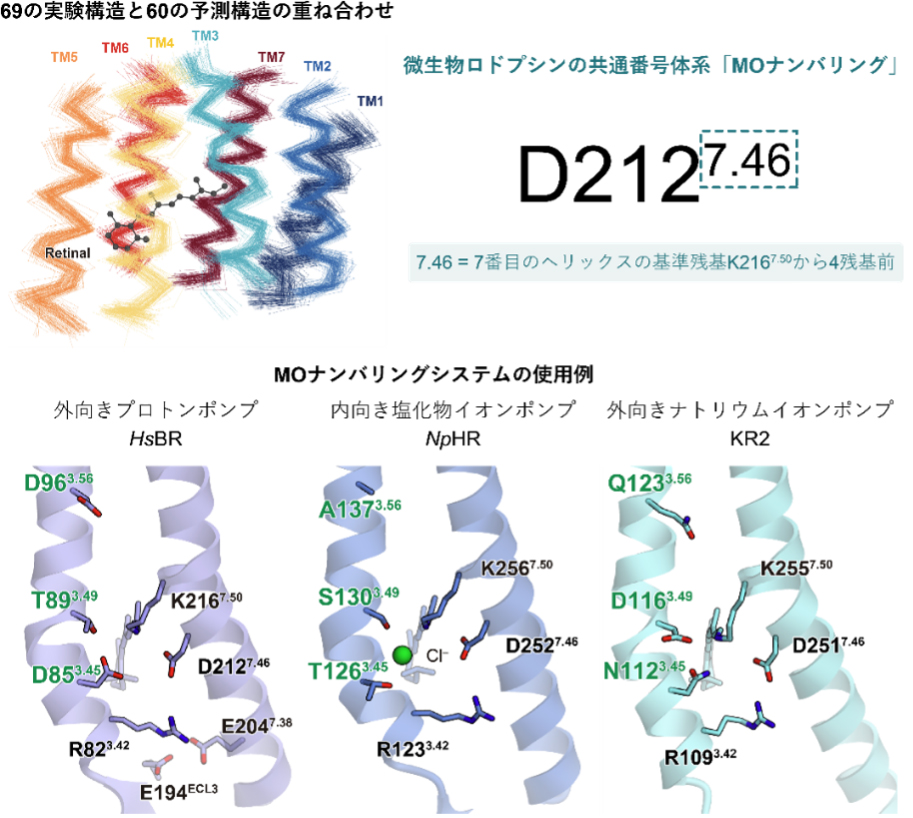
- 実験構造および予測構造をもとに、微生物ロドプシンのアミノ酸残基を共通の番号で示す「MOナンバリングシステム」を開発しました。
- 配列が大きく異なるロドプシン同士でも、構造的に対応するアミノ酸残基を一貫して比較でき、約4万件の配列データの解析と機能未知群の代表構造の検証を通じて、幅広い系統に適用できることを示しました。
- 構造解析、分光学、電気生理学の知見を共通の言葉で結び付け、機能未知ロドプシンの理解や次世代の光遺伝学ツール開発に役立つことが期待されます。
概要
東京大学先端科学技術研究センターの但馬聖也特任研究員、加藤英明教授、同大学大学院総合文化研究科の岸孝一郎大学院生(研究当時)、Paul Scherrer InstituteのFlurin S. Hidber氏、Xavier Deupi氏らの国際研究グループは、微生物ロドプシン(注1)のアミノ酸残基を、タンパク質ごとの配列番号に依存せず共通に示す「MOナンバリングシステム(注2)」を開発しました。
タンパク質ごとに異なる配列番号は、研究成果の比較を難しくしていました。研究グループは、69件の実験構造と構造予測ツールBoltz-1(注3)による60件の予測構造から共通の基準位置を定め、約4万件の配列解析と代表構造の検証を通じて、機能未知群にも適用できることを示しました。異なるロドプシンの知見を同じ番号で結び付けることで、機能の理解や光遺伝学(オプトジェネティクス)(注4)ツールの設計が進むと期待されます。
発表内容
微生物ロドプシンは、光を吸収するレチナール(注5)を利用し、イオン輸送など多様な働きを担います。近年、微生物のメタゲノム解析(注6)で新しい配列が次々に見つかる一方、それらの違いをどう理解するかが課題となっています。
従来、機能の異なるロドプシンを比較する際には、機能ごとの代表タンパク質の配列番号が使われてきました。しかし、タンパク質ごとに長さが異なるため同じ位置にあるアミノ酸でも番号が一致せず比較が困難でした。また、多様な機能をもつ微生物ロドプシン全体では配列一致度が低く、アミノ酸配列のみからロドプシン全体に共通する基準座標を設定することは困難でした。
そこで、本研究ではアミノ酸配列ではなく、微生物ロドプシンの持つ共通構造に着目し、基準座標の設定を試みました。微生物ロドプシンは、共通して7本の膜貫通ヘリックスからなるコア構造とレチナール結合ポケットを持ちます。近年、クライオ電子顕微鏡(注7)による構造解析技術の発展に伴い、多くの実験構造が得られるようになりました。加えて、機械学習による構造予測精度の向上により、実験構造に近い予測構造が得られるようになりました。そのため、多様な配列を示すロドプシンにおいて、構造をもとにした番号体系を用いることでロドプシン全体を容易に比較可能になると着想しました。
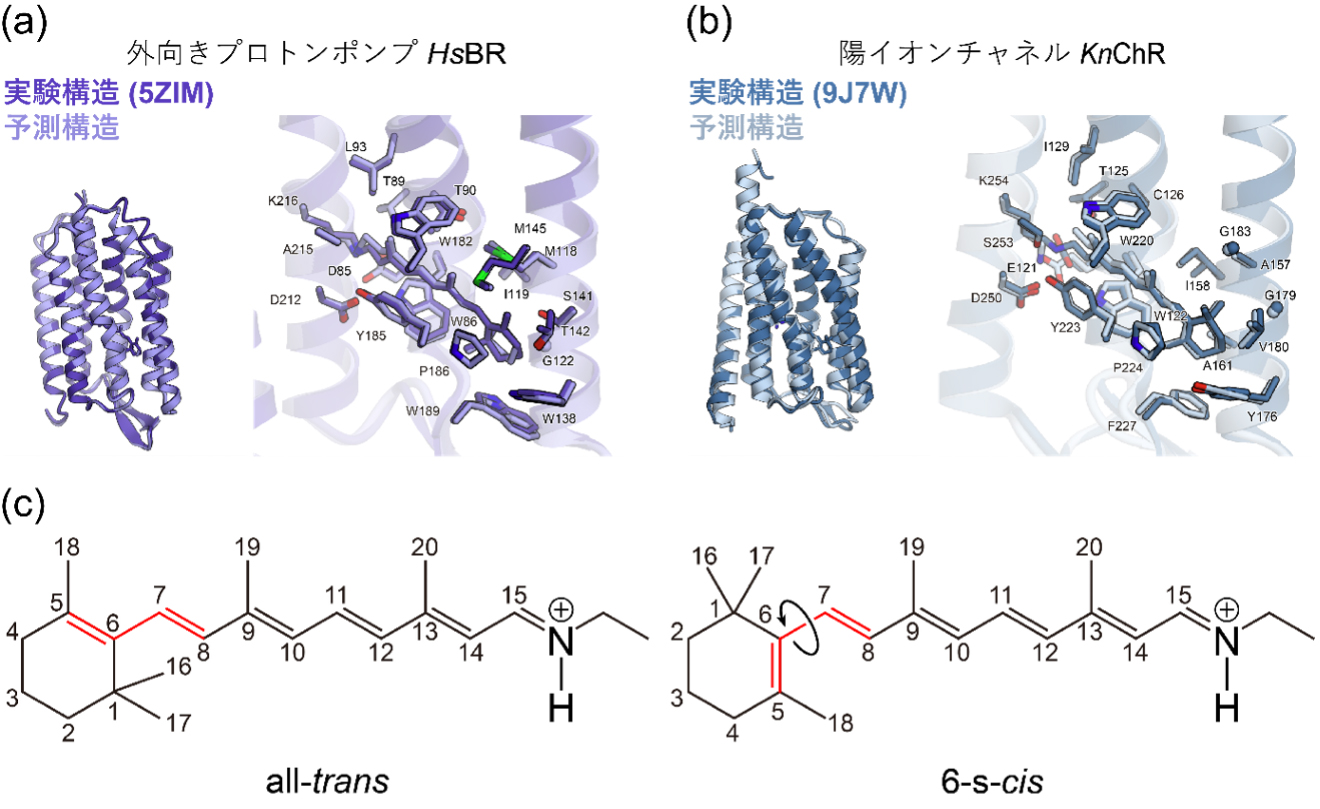
そのために、研究グループはまず構造予測の信頼性を検証しました。具体的にはBoltz-1を用いた検証を行ったところ、同手法はタンパク質骨格とレチナール結合部位に加え、一部のロドプシンに見られるレチナールの6-s-cis型の配置も再現することが分かりました(図1)。
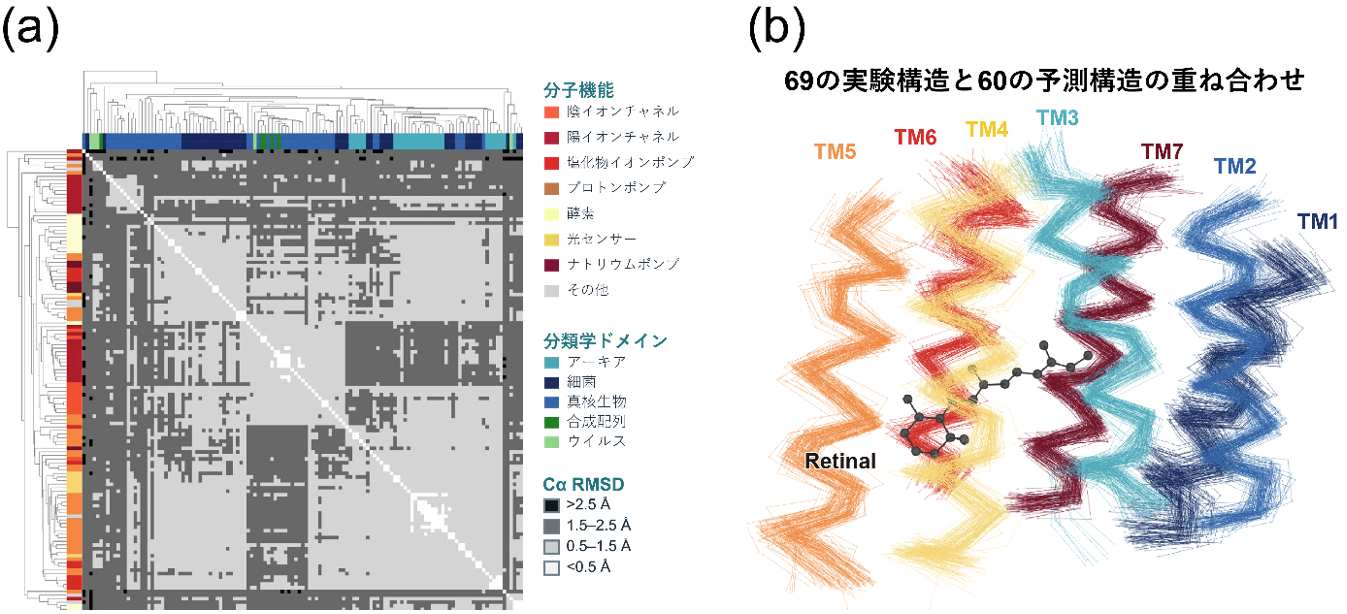
次に、69 件の実験構造と 60 件の予測構造を重ね合わせたところ、配列や機能が異なってい ても骨格はよく一致することが判明しました(図 2)。そこで、この共通性を「番号」をそろえ る手がかりとしました。
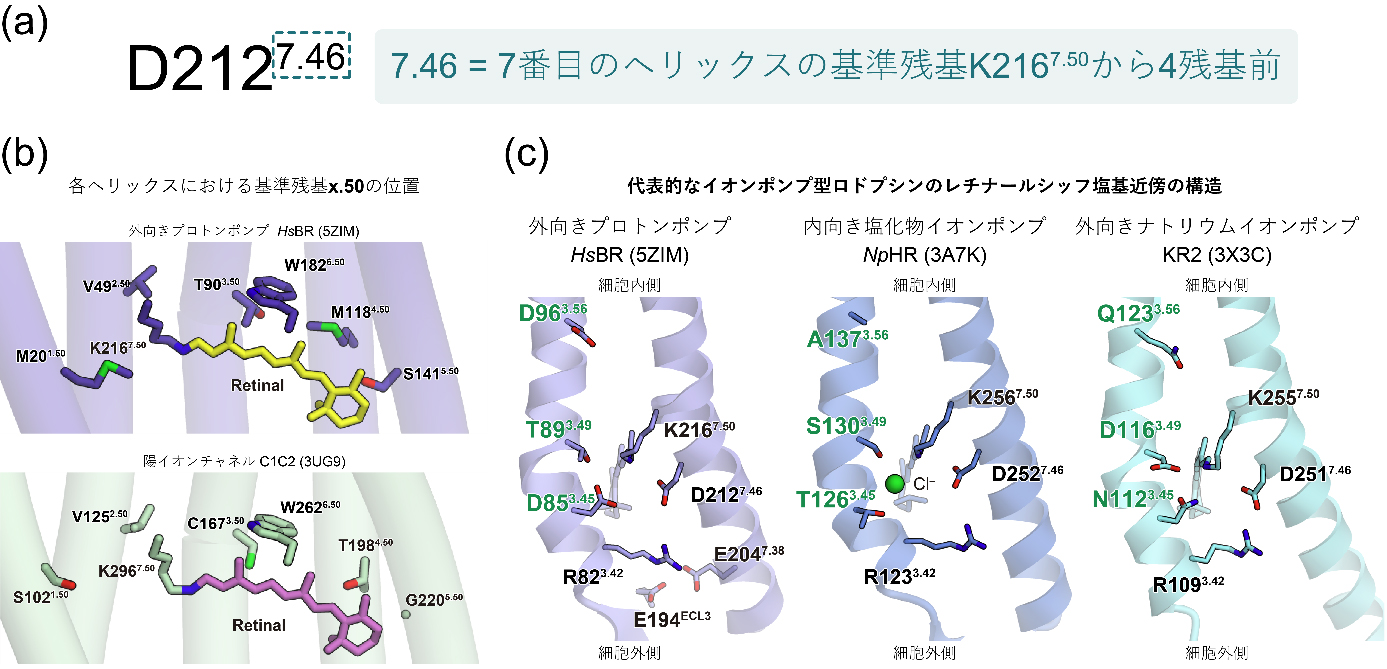
具体的には、レチナールとの距離、保存性、機能的重要性をもとに各ヘリックスの基準残基「X.50」を定め、そこからの相対位置で番号を付けました。「7.46」なら第7ヘリックスの基準から4残基手前を示します。また、ヘリックスに存在しない残基に関しては、番号の代わりに何番目の細胞外側、細胞内側のループとラベル付けすることで長さの異なる部位に関して対応できるようにしました(図3)。
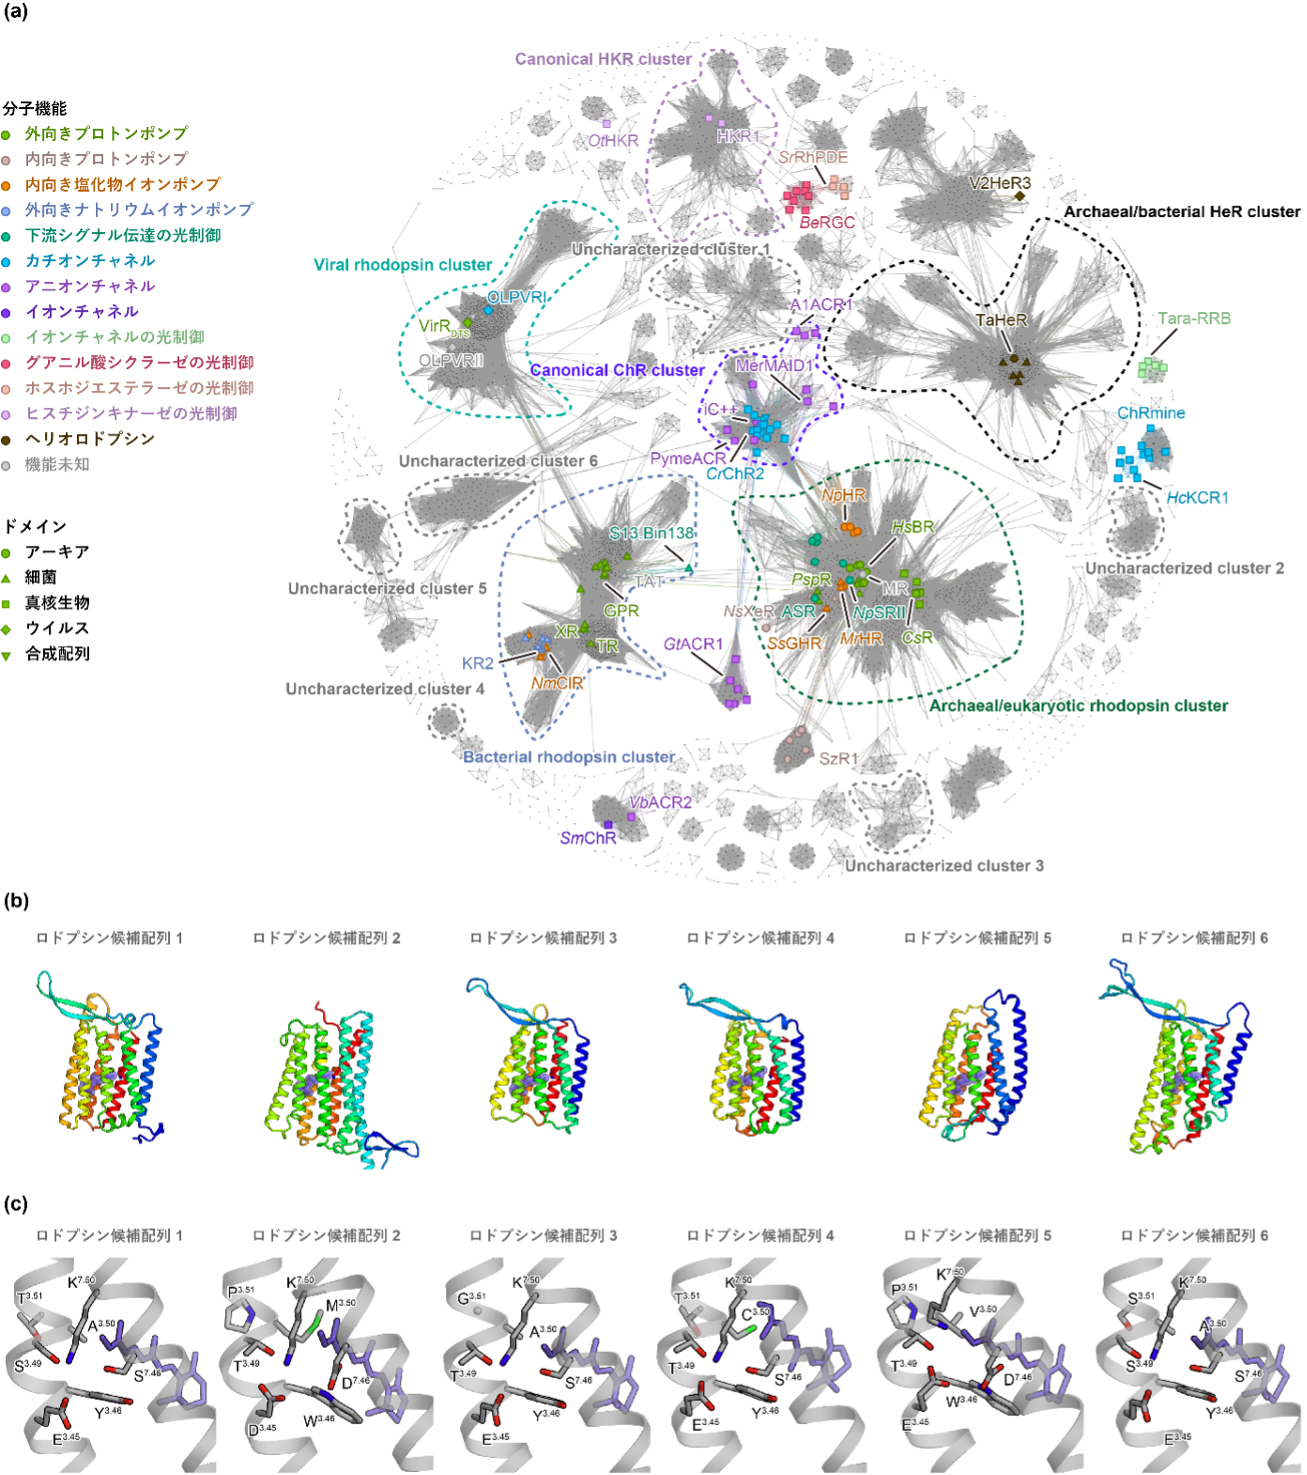
この番号体系が未知のロドプシンにも通用するか、30万件を超える候補から抽出した41,136件の非冗長配列で検証しました。機能未知の配列のみからなる17群のうち、6群の代表配列を構造予測したところ、いずれにも適用できることが判明しました(図4)。
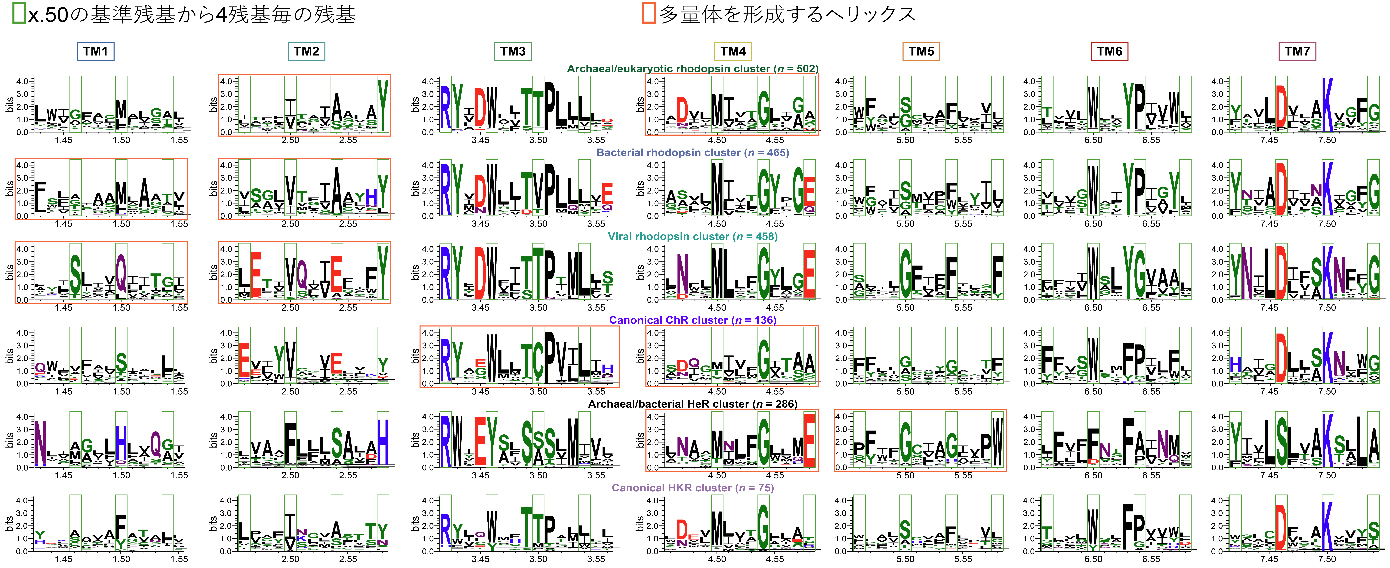
さらに、共通番号で配列をそろえたところ、立体構造における保存度の差も見えてきました。例えば、ヘリックスの内側やレチナール側の残基は脂質側よりよく保存されていました。一方、多量体の構成数がほぼ共通する群内でも、分子同士の接触部位は必ずしも高く保存されていませんでした(図5)。
MO番号を使えば、あるロドプシンで見つかった機能に重要な残基を、別のロドプシンの対応位置と照合できます。個々の研究成果を結び付け、未知ロドプシンの機能解明や光遺伝学ツールの設計、ひいては光遺伝学を用いた遺伝子治療薬開発につながると期待されます。
〇関連情報:
「新規光駆動型イオンチャネルの構造解明と高性能分子ツールの創出~神経科学に光を当てる~」(2022/02/03)
https://www.u-tokyo.ac.jp/focus/ja/press/z0109_00034.html
「微生物が光に反応してカリウムイオンを運ぶしくみの解明と神経科学への応用――四半世紀ぶりに発見された全く新規のカリウムイオン選択性のしくみ――」(2023/09/01)
https://www.c.u-tokyo.ac.jp/info/news/topics/20230901140000.html
発表者・研究者等情報
東京大学
先端科学技術研究センター
但馬 聖也(特任研究員)
加藤 英明(教授)〈兼:同大学大学院理学系研究科 教授〉
〈兼:同大学大学院総合文化研究科 教授〉
大学院総合文化研究科
岸 孝一郎(博士課程:研究当時)
大学院新領域創成科学研究科
吉澤 晋(准教授)〈兼:同大学大気海洋研究所 准教授〉
海洋研究開発機構(JAMSTEC)
生命地球科学研究部門 海洋バイオリソース展開・応用研究プログラム
西村 陽介(研究員)
〈研究当時:東京大学大気海洋研究所 特任研究員〉
ポール・シェラー研究所(Paul Scherrer Institute)
フルリン・S・ヒドベル(Flurin S. Hidber)(Research Assistant)
シャビエ・デウピ(Xavier Deupi)(Senior scientist)
論文情報
- 雑誌名:
- npj Structural Biology
- 題 名:
- A generic residue-numbering system for microbial rhodopsins
- 著者名:
- Flurin S. Hidber, Seiya Tajima, Koichiro E. Kishi, Yosuke Nishimura, Susumu Yoshizawa, Xavier Deupi*, Hideaki E. Kato*
- DOI:
- 10.1038/s44511-026-00004-w
- URL:
- https://doi.org/10.1038/s44511-026-00004-w
研究助成
本研究は、中島記念財団、武田科学振興財団、日本医療研究開発機構(AMED)(課題番号:24bm1123057h0001、26ak0101309h0001)、日本学術振興会(JSPS) 科研費(課題番号:JP24KJ0788、JP22K15089、JP22H00557、JP22K19265、JP22H00400、JP25H01338)、科学技術振興機構(JST) 戦略的創造研究推進事業 CREST(課題番号:JPMJCR21P3、JPMJCR23B1)、JST 創発的研究支援事業(課題番号:JPMJFR204S)、欧州連合Horizon 2020研究・イノベーションプログラム(助成番号:951644)、スイス国立科学財団(助成番号:192780)の支援により実施されました。
用語解説
- (注1)微生物ロドプシン
アーキア、細菌、真核微生物、ウイルスなどに広く見られる光受容膜タンパク質。多くは7本の膜貫通ヘリックスを持ち、レチナールを利用して光エネルギーをイオン輸送、情報伝達、酵素活性の調節などへ変換する。 - (注2)MOナンバリングシステム
微生物ロドプシンの構造的に対応するアミノ酸残基へ共通番号を割り当てる体系。番号はヘリックス番号と、各ヘリックスの基準残基を50とし、基準残基からの相対位置を組み合わせて表す。 - (注3)構造予測ツールBoltz-1
アミノ酸配列などの情報から、タンパク質と低分子の三次元的な配置を人工知能で予測する手法。本研究では、微生物ロドプシンとレチナールの複合体構造の予測に用いた。 - (注4)光遺伝学(オプトジェネティクス)
特定の細胞に光受容タンパク質を発現させ、光によって細胞の活動を制御する技術。神経科学をはじめとする生命科学研究で広く用いられている。 - (注5)レチナール
ビタミンAから作られる小分子で、多くのロドプシンの内部に結合して光を吸収する。光を受けると形が変わり、その変化がタンパク質全体の働きを引き起こす。 - (注6)メタゲノム解析
環境中の微生物を一つずつ培養せず、試料に含まれる遺伝情報をまとめて解析する手法。多様な生物由来の遺伝子を網羅的に探索できる。 - (注7)クライオ電子顕微鏡
試料を急速に凍結し、低温に保ったまま電子線で観察する手法。得られた多数の画像を解析することで、タンパク質などの立体構造を調べることができる。
問合せ先
東京大学先端科学技術研究センター
教授 加藤 英明(かとう ひであき)
関連タグ
