

「動く遺伝子」✕「遺伝子のはさみ」
―DNAを狙った場所に挿入する仕組みを解明―
- 研究成果
2026年10月28日
東京大学
科学技術振興機構(JST)
発表のポイント
- R2レトロトランスポゾンは、RNAを介して自身の配列をゲノムに挿入する「動く遺伝子」であり、キンカチョウ由来のR2(R2Tg)はDNA挿入技術に応用されている。
- クライオ電子顕微鏡を用いて、R2Tg–鋳型RNA–リボソームDNA複合体の立体構造を決定し、R2TgによるDNA挿入の分子メカニズムを明らかにした。
- Cas9–ガイドRNA–標的DNA複合体とR2Tg–鋳型RNA複合体からなるSTITCHR複合体の立体構造を決定し、Cas9とR2Tgが協働して、鋳型RNAをもとに合成したDNAをゲノムの狙った部位に挿入する分子メカニズムを明らかにした。
- 構造情報と機械学習モデルを活用してゲノム編集ツールSTITCHRを改良し、DNA挿入効率が向上した「e-STITCHR」を開発した。
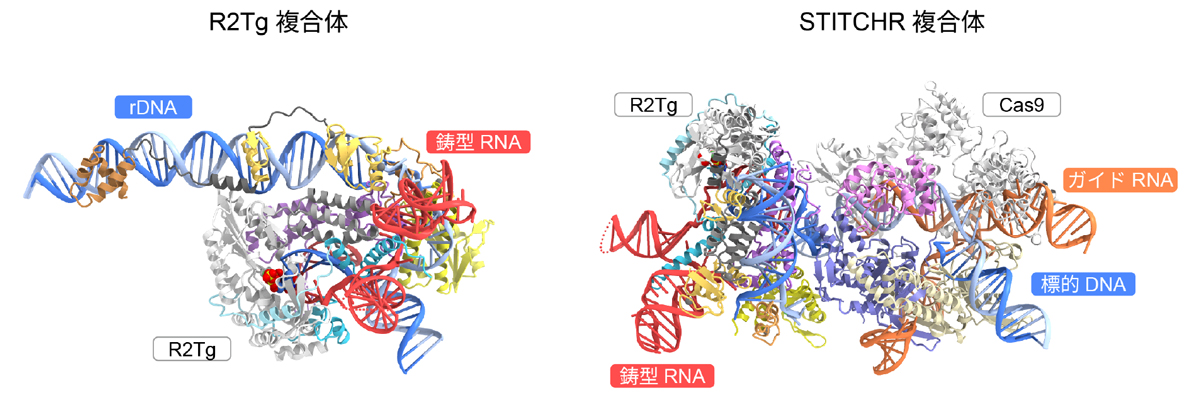
概要
R2レトロトランスポゾン(注1)は、真核生物のゲノムに存在する28SリボソームDNA(rDNA、注2)の特定の部位に自身のコピーを挿入する「動く遺伝子」です。rDNAに挿入されたR2遺伝子から鋳型RNAが転写され、そのRNAからR2タンパク質が翻訳されます。R2タンパク質と鋳型RNAは複合体を形成し、標的始動型逆転写(target-primed reverse transcription:TPRT、注3)とよばれる反応によって、別のrDNA部位にR2遺伝子のコピーを挿入します。近年、キンカチョウ由来のR2(R2Tg)が高い活性を示し、ヒト培養細胞のゲノム中のrDNA部位に、鋳型RNAにコードされた任意の塩基配列を挿入できることが明らかになり、ゲノム編集技術(注4)への応用が期待されています。さらに、本研究チームは、R2TgとCRISPR-Cas9(注5)を組み合わせることにより、ガイドRNA(注6)で指定した様々なゲノム領域に目的のDNA配列を挿入できるゲノム編集ツールSTITCHR(site-specific target-primed insertion through targeted CRISPR homing of retroelements)を開発しました。しかし、R2TgおよびSTITCHRによるDNA挿入のメカニズムの詳細は不明でした。
今回、東京大学大学院工学系研究科化学生命工学専攻の小松大祐大学院生、平泉将浩助教、同大学先端科学技術研究センターの西増弘志教授らの研究チームは、Harvard Medical SchoolのChristopher W. Fell研究員、Jonathan S. Gootenberg主任研究員、Omar O. Abudayyeh主任研究員、および金沢大学ナノ生命科学研究所の柴田幹大教授との共同研究により、クライオ電子顕微鏡(注7)を用いて、R2Tg–鋳型RNA–rDNA複合体およびCas9–ガイドRNA–標的DNA–R2Tg–鋳型RNA複合体(STITCHR複合体と命名)の立体構造を決定し、R2TgおよびSTITCHRによるDNA挿入メカニズムを解明しました。さらに、高速原子間力顕微鏡(注8)を用いて、溶液中のSTITCHR複合体の可視化に成功しました。また、構造情報と機械学習モデルを用いてSTITCHRを改変し、DNA挿入活性が向上したSTITCHR改変体の開発に成功しました。本研究は、レトロトランスポゾンのDNA挿入メカニズムの理解を深めるとともに、長鎖DNA挿入を介したゲノム編集技術の開発基盤となることが期待されます。本成果は、2026年10月28日(英国時間)に、英国科学誌「Nature Structural & Molecular Biology」のオンライン版に掲載されました。
DNA結合、DNA切断、DNA合成をすべて一つのタンパク質で行うR2の機能は非常に複雑であり、その構造機能解析はとても楽しかったです。原核生物の獲得免疫機構CRISPR-Cas9と真核生物のレトロトランスポゾンR2Tgが協働している構造を決定できたときは、喜びとともに驚きを感じました。気合いを入れて研究してよかったです!(東京大学大学院工学系研究科 大学院生 小松大祐)
R2Tgは、私が2022年に西増研へ加入した時に最初に扱ったタンパク質でした。当時は「こんなの構造解けないな」と思いながら、研究室に配属された学生と一緒に取り組むことになりました。Cas9とR2Tgという別のタンパク質が共役して大きい遺伝子を挿入している様子を明らかにできてよかったです。研究にとって大事なのは「気合い」と「やりきる力」だと再認識しました。 (東京大学大学院工学系研究科 助教 平泉将浩)
R2レトロトランスポゾンは、東京大学名誉教授の藤原晴彦先生によって、先生が大学院生だった1984年に、カイコのrDNAに挿入された配列として発見された転移因子です。カイコ由来のR2(R2Bm)の生化学的解析を通じて、その転移メカニズムは長年研究されてきましたが、不明な点が残されていました。そのような状況の中、Cas7-11(https://www.rcast.u-tokyo.ac.jp/ja/news/release/20220528.html 、https://www.rcast.u-tokyo.ac.jp/ja/news/release/20221104.html)やBxb1(https://www.rcast.u-tokyo.ac.jp/ja/news/release/20260609.html)の共同研究を行っていたJonathan S. Gootenberg博士とOmar O. Abudayyeh博士らが、キンカチョウ由来のR2(R2Tg)はR2Bmとは異なり、ヒト細胞で活性を示し、さらに、R2TgとCas9を組み合わせることにより、狙ったゲノム領域に長鎖DNAを組み込めることを見出しました。そこで、2022年6月に共同研究を開始しました。まず、助教の平泉くんがR2Tgタンパク質の調製に取り組みました。R2Tgタンパク質の発現・精製は容易ではありませんでしたが、試行錯誤の末、精製に成功しました。2023年4月からは、学部4年生として配属された藤松くんが、平泉くんとともにクライオ電子顕微鏡を用いた構造解析に取り組んでくれました。しかし、R2Tg-RNA-DNA複合体は柔軟性が高く、構造決定に十分な質の電顕画像を得ることはできませんでした。そこで、他の逆転写酵素の構造研究を参考に、ddNTPを添加して複合体を安定化する戦略を試そうと考えました。そのような折、2023年4月に別のグループからR2Bm-RNA-DNA複合体のクライオ電子顕微鏡構造がScience誌に報告されました。このグループもddNTPを添加することで逆転写開始状態の構造を決定していました。R2の最初の構造は報告されてしまいましたが、R2Tgはヒト細胞で組み込み活性を示し、R2Bmとは配列も異なることから、構造決定を目指して研究を続けました。2023年10月にはR2Tg-RNA-DNA複合体の電顕データの取得に成功し、2024年3月に構造を決定しました。2024年4月には、学部4年生として配属された小松くんが、R2Tgの構造解析と生化学的解析を引き継いでくれました。さらに、STITCHR複合体(R2TgとCas9の複合体)の構造解析にも取り組んでもらうことにしました。正直なところ、STITCHR複合体は巨大で不安定なため、構造決定は無理だろうと思っていましたが、学部4年生だからこそ、挑戦的なプロジェクトに取り組んでほしいと考え、小松くんに託しました。2022年6月に共同研究を開始した当初は、R2Tgに関する報告はなかったのですが、2024年2月と7月に、他のグループからR2Tgを用いたゲノム編集に関する論文が、それぞれNature Biotechnology誌とCell誌に報告されました。我々の共同研究の論文は、2022年8月にNature誌に投稿し、4度のリバイズを経て、2025年4月に出版されました。また、2024年11月には、他のグループから、R2Tg-RNA-DNA複合体構造に関するプレプリントも公開されました(2025年6月にScience Advances誌に掲載)。このように研究競争が激化する中、平泉くんの指導の下、小松くんはSTITCHR複合体の構造解析を進め、2025年3月に構造決定に成功しました。その結果、R2TgとCas9が協働してDNAの組み込みを触媒するメカニズムが明らかになりました。2025年5月にNature誌に投稿し、6月に査読コメントが返ってきました。2人のレビュアーは、「These structures serve as critical supplements to the authors' prior work, providing detailed mechanistic insights into how R2Tg specifically recognizes the 3′UTR of its RNA template and target DNA sequences. The figures and data presentations are exceptionally well-constructed.」「This manuscript presents an interesting and timely structural investigation into the A-clade R2 retrotransposon R2Tg.」と好意的でした。一方、別のレビュアーは、「The manuscript is of high quality, figures are beautiful, descriptions are clear. The structures are of high quality and high resolution, and it's an interesting topic of study. It is an excellent structural study, however the insights are not powerful enough to merit publication in Nature.」と批判的でしたが、論文はリバイズになりました。そこで、金沢大学の柴田さんとの共同研究によりHS-AFM解析を行い、STITCHR複合体の溶液中での立体構造を観察しました。さらに、タンパク質デザインを用いてSTITCHRの活性を向上させることにも成功し、2026年1月にリバイズ原稿を投稿しました。2026年3月に査読コメントが返ってきましたが、残念ながら結果はリジェクトでした。2人のレビュアーは、「The presentation is clear, and the figures are of high quality.」「While the conceptual novelty relative to recent literature remains a matter for editorial discretion, the technical execution of the structural work is impressive.」と評価してくれました。しかし、もう1人のレビュアーは「The design improvements are modest, and not better than conventional saturation mutagenesis approaches. Although the structure is in itself interesting, given the increasing number of reverse transcriptase structures already published, the story lacks in innovation and novelty.」と、STITCHR改変体の活性向上は限定的であり、リバイズ中に報告された類似のR2Tg複合体構造などを考慮すると、今回の論文は新規性を欠くという評価でした。たしかに、R2Tg複合体構造の新規性は低下していました。しかし、STITCHR複合体の構造は新規かつ興味深いものであり、別の論文にできるほどの追加実験も行っていたため、リジェクトという決定には落胆しました。その後、Nature Structural & Molecular Biology誌にトランスファーしましたが、編集部でのトラブルなどにより、査読プロセスがなかなか進みませんでした。何度か問い合わせを行った末、追加実験なしで、2026年7月に論文がアクセプトされました。Nature誌への投稿から、すでに1年以上が経過していました。アクセプトまでにはさまざまな困難がありましたが、美しい論文として発表できてよかったです。(東京大学先端科学技術研究センター 教授 西増弘志)
発表内容
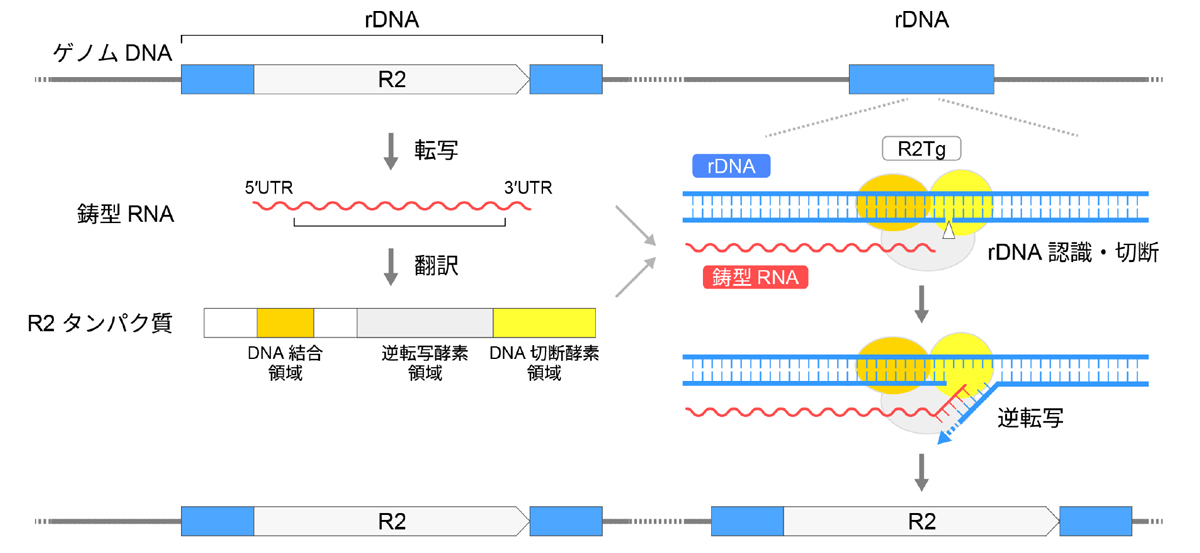
レトロトランスポゾンは、自身のDNA配列をRNAに転写し、そのRNAを逆転写してゲノム上の別の場所に自身のコピーを挿入する転移因子です。ヒトでは、レトロトランスポゾンに由来する配列がゲノム全体の4割以上を占めています。R2とよばれるレトロトランスポゾンは、節足動物や鳥類など様々な真核生物のゲノムに存在し、28SリボソームDNA(rDNA)の特定の部位に転移します。R2の転移は、ゲノム中のR2座位から転写された鋳型RNAと、そのRNAにコードされたR2タンパク質によって進行します(図1)。R2タンパク質は、DNA結合領域、逆転写酵素領域、DNA切断酵素領域をもつ多機能タンパク質です。まず、R2タンパク質は鋳型RNAと複合体を形成し、DNA結合領域を介してrDNAに結合します。次に、DNA切断酵素領域を用いて一方のDNA鎖に切れ目を入れます。続いて、生じたDNAの3′末端をプライマーとして、逆転写酵素領域が鋳型RNAを逆転写し、鋳型RNAと相補的なDNAを合成します。こうした反応を経て、R2のコピーがrDNA部位に挿入されます。このように、切断された標的DNAを起点とする逆転写反応は、標的始動型逆転写(TPRT)とよばれます。
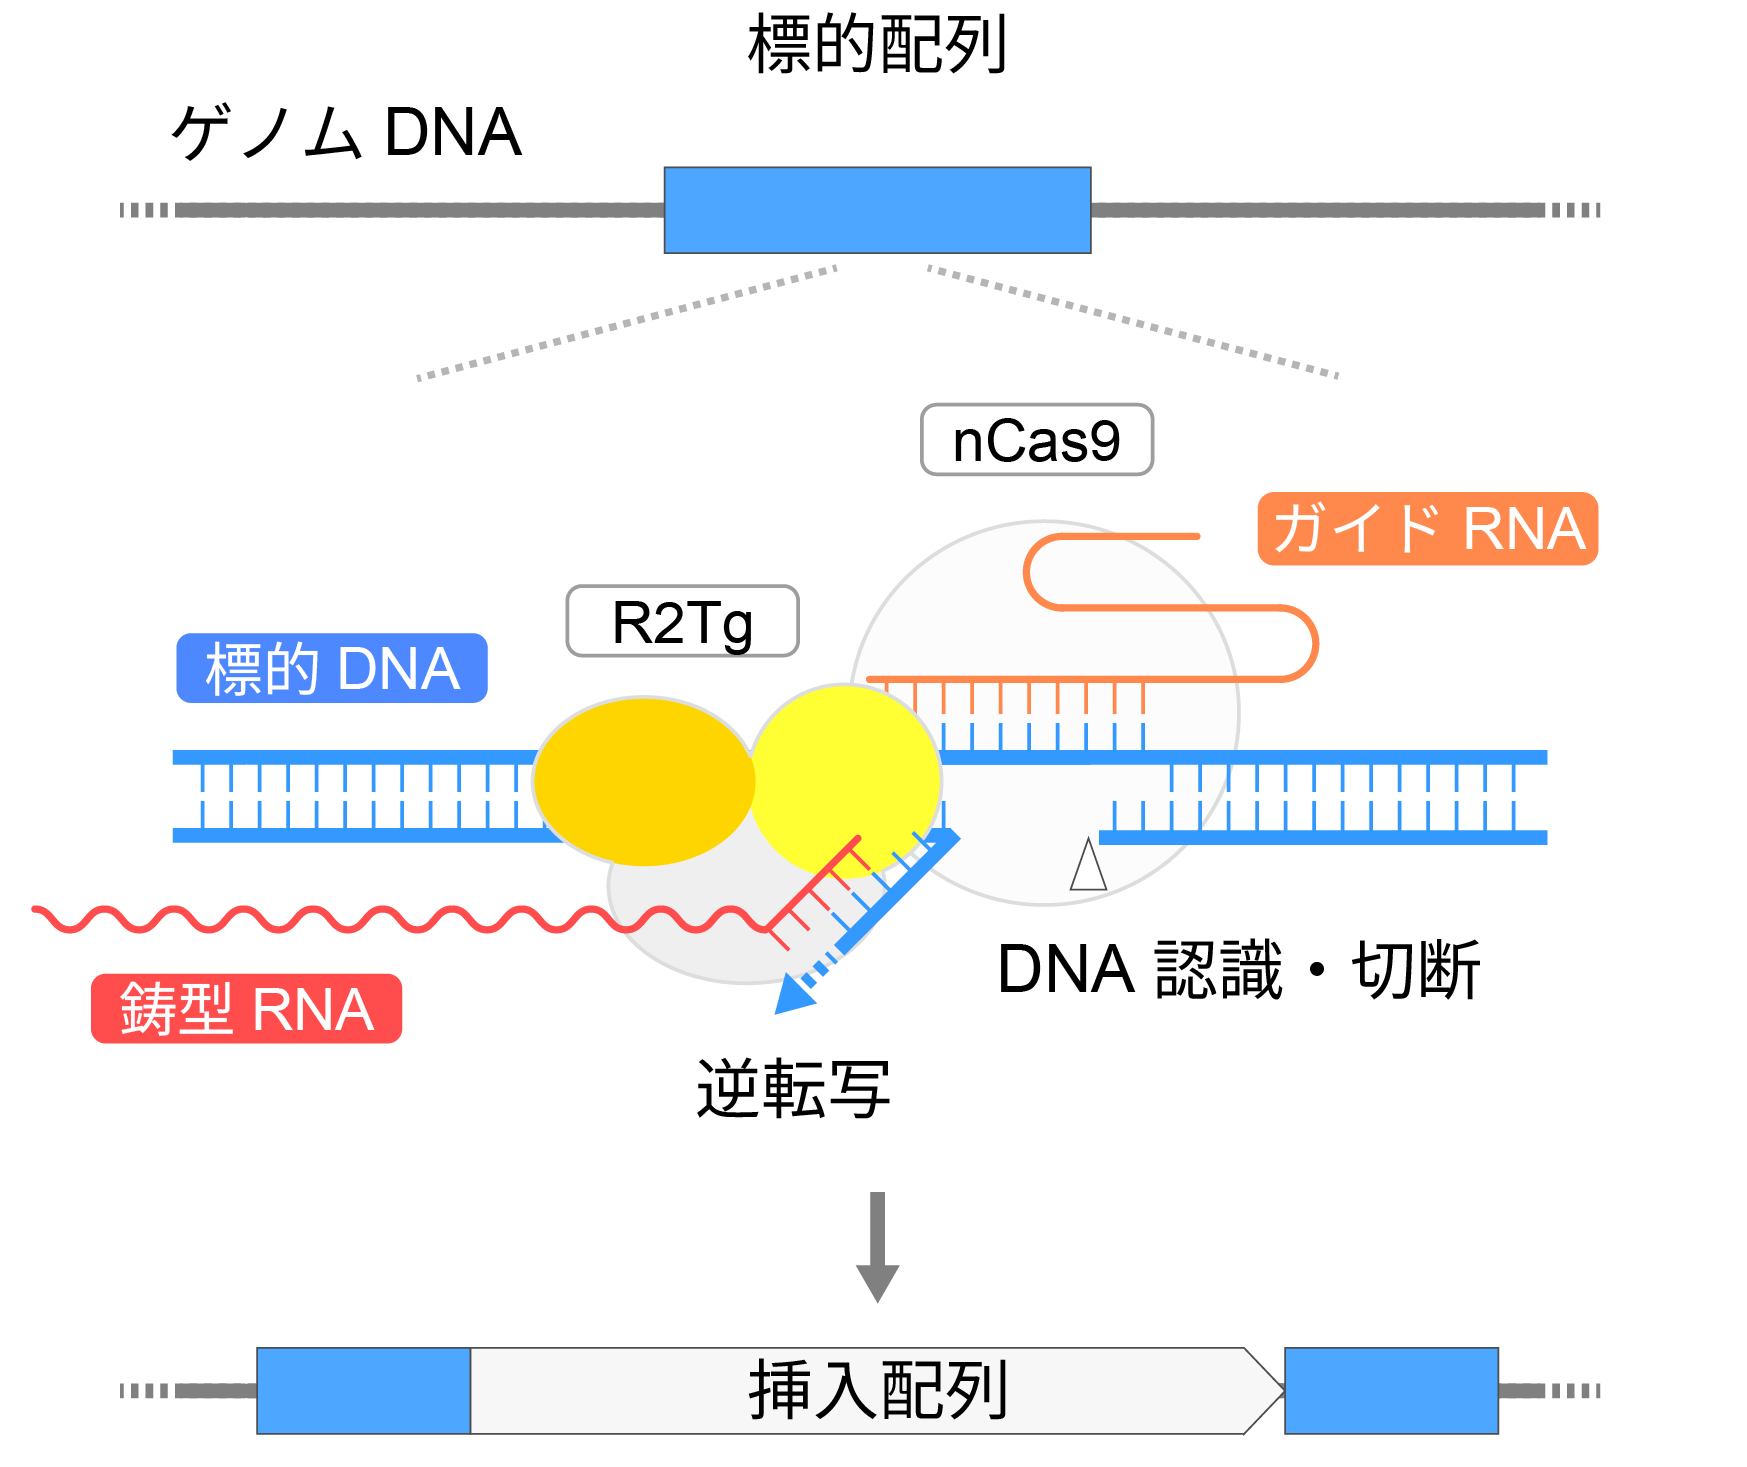
近年、キンカチョウ(Taeniopygia guttata)由来のR2(R2Tg)が、ヒト培養細胞のゲノム中のrDNA部位に、鋳型RNAにコードされた任意の塩基配列を挿入できることが報告され、ゲノム編集技術への応用が期待されています。しかし、R2Tgが鋳型RNAと複合体を形成し、rDNAに特異的に結合して特定の位置を切断し、鋳型RNAの特定の位置から逆転写を開始するメカニズムは不明でした。また、本研究チームは2025年に、R2TgとCRISPR-Cas9を組み合わせることにより、ガイドRNAで指定したrDNA以外の標的部位に目的のDNA配列を挿入するゲノム編集ツールSTITCHRを開発しました(関連論文1、図2)。STITCHRは10キロベースに及ぶ長鎖DNAを様々な標的部位に挿入できるため、新たなゲノム編集技術として注目されています。しかし、Cas9とR2Tgが協働して標的部位に長鎖DNAを挿入するメカニズムは不明でした。
まず、本研究チームは、クライオ電子顕微鏡を用いて、逆転写開始時のR2Tgタンパク質–鋳型RNA–rDNA複合体の立体構造を2.2 Å分解能で決定しました(図3)。構造解析の結果、鋳型RNAがR2Tgに結合し、逆転写が開始されるメカニズムが明らかになりました。注目すべきことに、鋳型RNAの3′側に存在する325塩基の3′非翻訳領域(3′UTR)のうち、3′末端側の66塩基(3′UTRコアと命名)が、ステムループやシュードノットとよばれる特徴的な二次構造を形成し、R2Tgと相互作用していました(図4)。一方、3′UTRのそれ以外の部分は、固定された構造をとらず、柔軟であることが示されました。さらに、鋳型RNAの3′末端側に存在する、rDNAと相補的な配列(3′相同アーム:3′HA)は、切断されたボトム鎖の3′末端側の領域と塩基対を形成し、逆転写酵素領域の活性部位に収容されていました。これらの結果から、鋳型RNAの特定の位置から逆転写が開始されるメカニズムが明らかになりました。
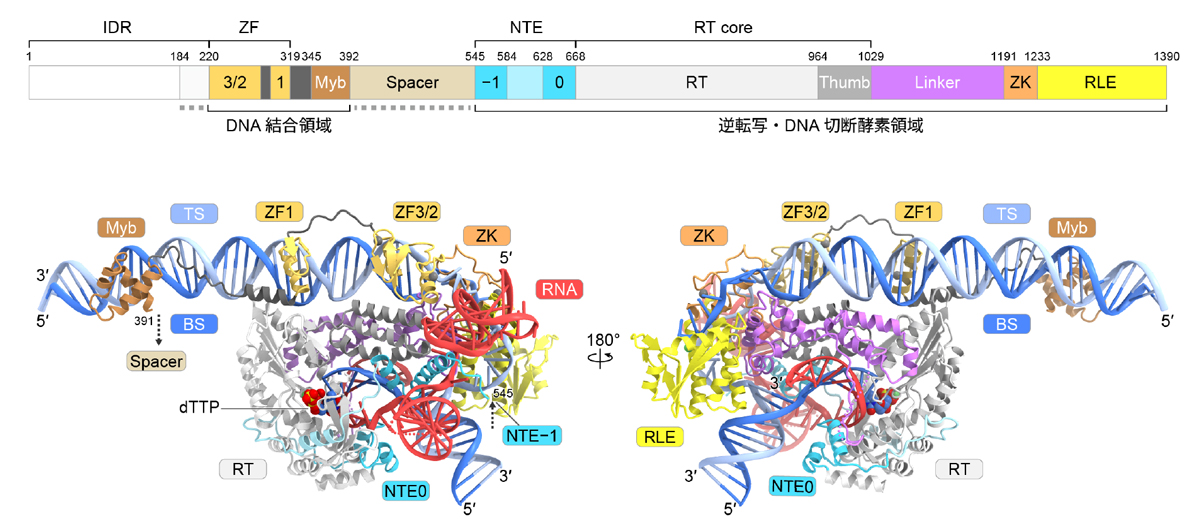
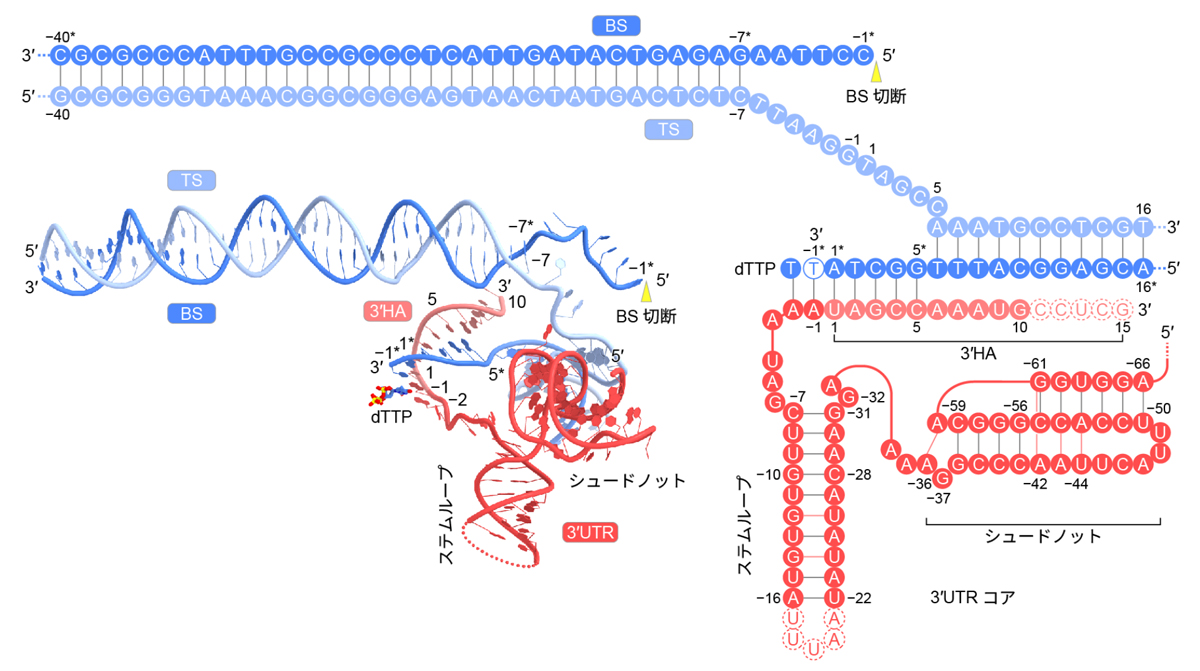
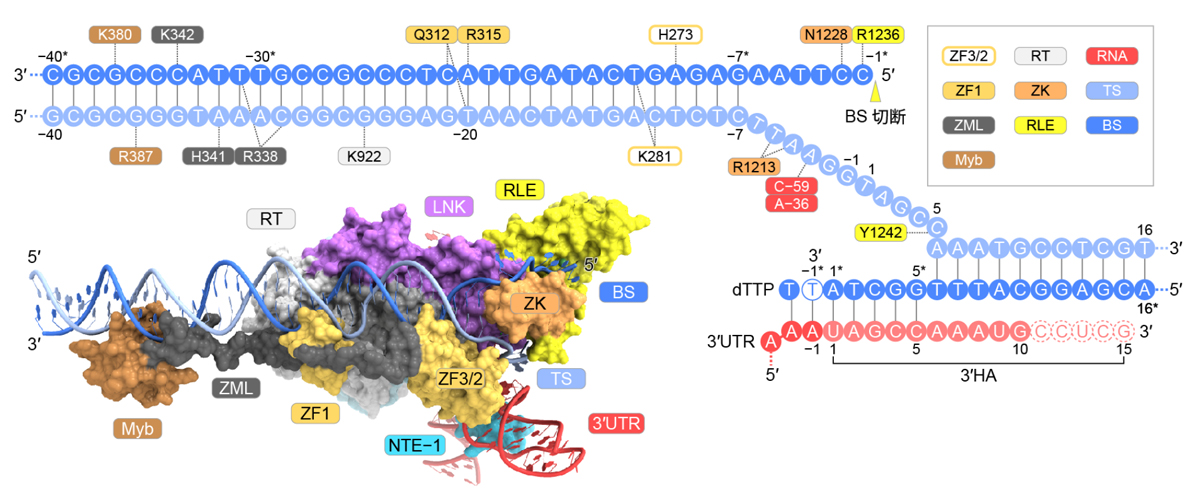
構造解析から、R2Tgが複数のドメインを用いてrDNAを認識し、特定の位置に切れ目を入れるメカニズムも明らかになりました(図5)。R2TgのDNA結合領域(ZF3/2ドメイン、ZF1ドメイン、Mybドメイン)は、rDNAの二本鎖DNA領域と複数の塩基特異的な相互作用を形成していました。興味深いことに、ZKドメインがくさびのようにはたらいてDNA二重らせんを2本のDNA鎖(トップ鎖とボトム鎖)に分離し、一本鎖となったボトム鎖がRLEドメインによって特定の位置で切断されることがわかりました。
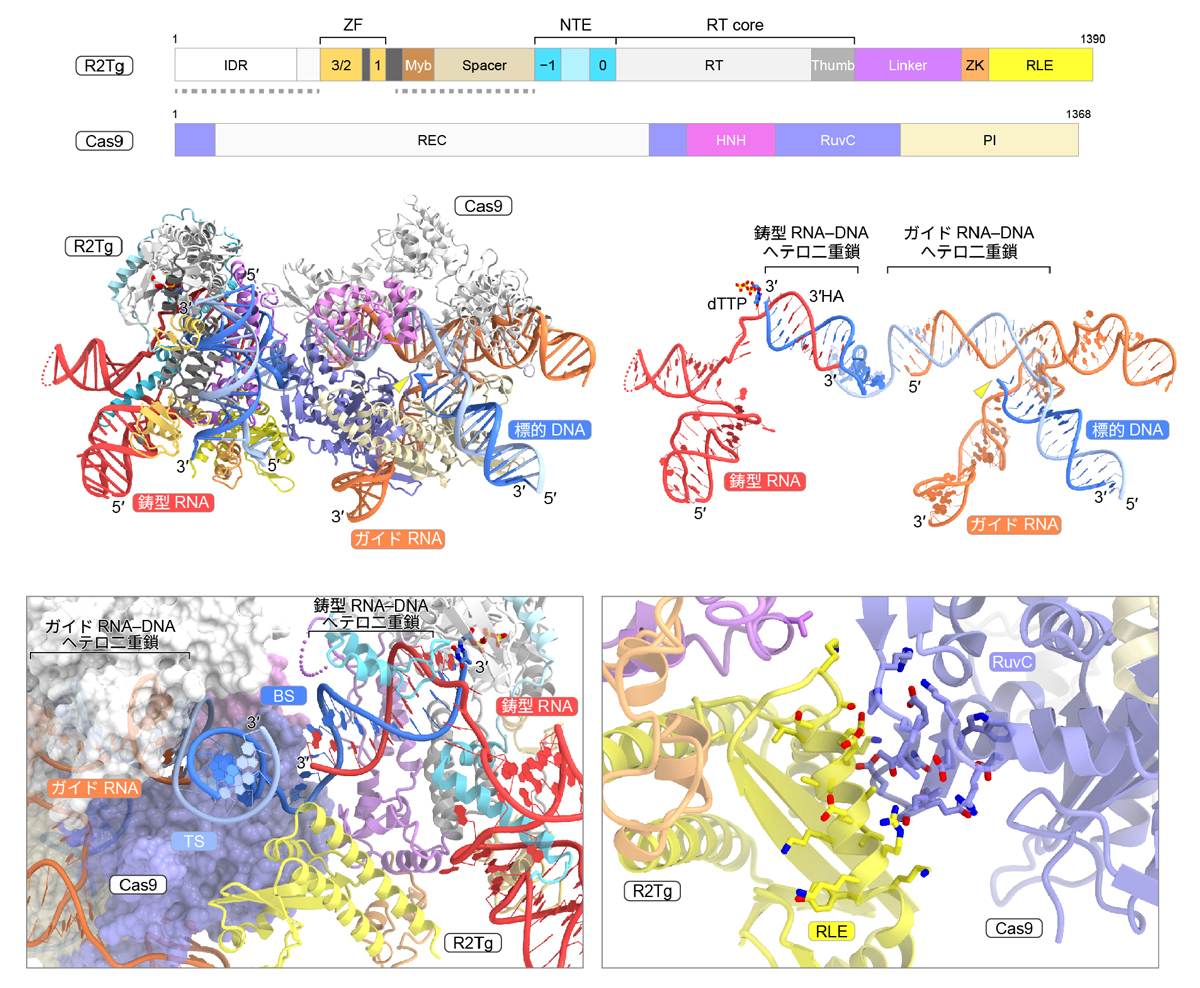
続いて、本研究チームは、Cas9タンパク質、ガイドRNA、標的DNA、R2Tgタンパク質、鋳型RNAからなるSTITCHR複合体の逆転写開始時の立体構造を3.3 Å分解能で決定しました(図6)。その結果、Cas9とR2Tgが協働して、標的DNAの特定の部位に鋳型RNAにコードされたDNA配列を挿入するメカニズムが明らかになりました。予想どおり、Cas9–ガイドRNA複合体は、ガイドRNAのガイド配列を介して標的DNAの一方のDNA鎖に結合し、Cas9によって切断されたもう一方のDNA鎖は、R2Tg–鋳型RNA複合体中の鋳型RNAの3′HAとRNA–DNA二重らせんを形成し、R2TgのRTドメインの活性部位に収容されていました。予想していなかったこととして、R2TgのRLEドメインとCas9のRuvCドメインとの相互作用によって、逆転写開始状態の立体構造が安定化されていることが示唆されました。
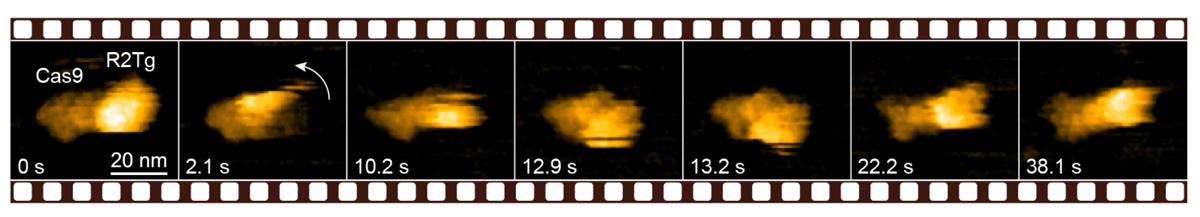
さらに、高速原子間力顕微鏡(HS-AFM)を用いて、溶液中のSTITCHR複合体を一分子レベルで観察しました(図7)。その結果、クライオ電子顕微鏡解析によって得られた構造と一致して、溶液中でもR2TgがCas9に近接した位置に存在することが確認されました。また、R2TgとCas9の相対的な配置にゆらぎが観察されたことから、両者の相互作用が動的であることが示唆されました。
本研究チームは、得られた構造情報と機械学習モデルを用いて、STITCHRの改良に取り組みました。まず、タンパク質言語モデル(注9)であるESM1bを用いて、R2TgのDNA挿入活性を向上させる可能性のあるアミノ酸置換を探索し、N640A、E1027K、E1027Rの3つの活性向上変異を同定しました(図8)。さらに、R2TgとCas9の相互作用界面を強化することでSTITCHRのDNA挿入活性が向上するという仮説を立て、ProteinMPNN(注10)などの手法を用いて、Cas9–R2Tg界面の様々なアミノ酸配列を設計しました。その結果、R2Tgに5つの変異を導入した「デザイン2」が、ヒト培養細胞において野生型の約1.5~2倍のDNA挿入効率を示すことを見いだしました(図8)。さらに、デザイン2の5つの変異とE1027R変異を組み合わせた改変体(e-STITCHR)は、従来のSTITCHRの約2~2.5倍のDNA挿入効率を示しました(図8)。構造予測から、これらの変異はCas9とR2Tgの間に新たな相互作用を生み出すとともに、界面の立体障害を緩和することが示唆されました。
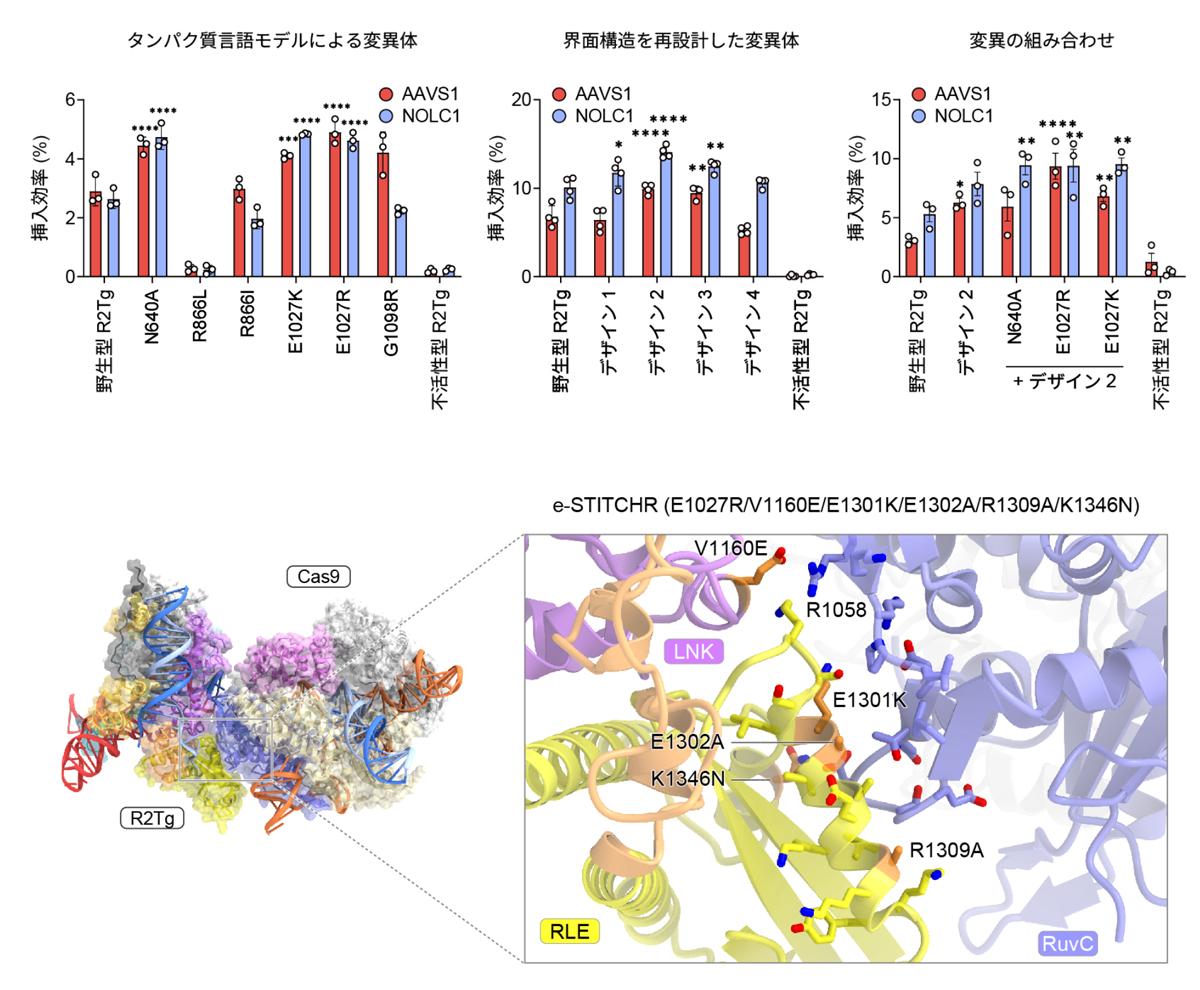
本研究により、R2Tgが鋳型RNAとrDNAを認識し、DNAの切断と鋳型RNAの逆転写を共役させることで、鋳型RNAにコードされた配列をrDNAの標的部位に挿入する分子メカニズムの一端が明らかになりました。また、STITCHR複合体中でR2TgとCas9が連携してはたらく様子を可視化し、DNA挿入活性が向上したe-STITCHRの開発に成功しました。本成果は、レトロトランスポゾンの転移機構への理解を深めるとともに、長鎖DNAをゲノムの狙った場所に書き込む次世代のゲノム編集技術の基盤となることが期待されます。
発表者・研究者等情報
東京大学
大学院工学系研究科
小松 大祐 大学院生(修士課程)
平泉 将浩 助教
藤松 健太 大学院生(修士課程、研究当時)
長畑 直人 大学院生(博士課程)
山田 崇太 大学院生(博士課程)
先端科学技術研究センター
山下 恵太郎 准教授
西増 弘志 教授
兼:東京大学大学院工学系研究科 教授
金沢大学
ナノ生命科学研究所
柴田 幹大 教授
Harvard Medical School
Christopher W. Fell Postdoctoral Research Fellow
Jonathan S. Gootenberg Investigator
Omar O. Abudayyeh Investigator
論文情報
- 雑誌名:
- 「Nature Structural & Molecular Biology」(オンライン版:10月28日)
- 題 名:
- Structural mechanism of programmable gene integration by the R2 retrotransposon coupled with CRISPR–Cas9
- 著者名:
- Daisuke Komatsu†, Masahiro Hiraizumi†, Christopher W. Fell†, Kenta Fujimatsu, Naoto Nagahata, Sota Yamada, Sworaj Sapkota, Harsh Ramani, Benjamin Arya, Mikihiro Shibata, Keitaro Yamashita, Jonathan S. Gootenberg*, Omar O. Abudayyeh*, Hiroshi Nishimasu*(†共同筆頭著者、*責任著者)
- DOI:
- https://doi.org/10.1038/s41594-026-01903-7
- URL:
- https://www.nature.com/articles/s41594-026-01903-7
研究助成
本研究は、日本医療研究開発機構(AMED)「創薬等先端技術支援プラットフォーム(BINDS)(課題番号:JP21am0101115)」、日本学術振興会(JSPS)科研費「特別研究員奨励費(課題番号:JP25KJ1023)」、「基盤研究(S)(課題番号:JP25H00436)」、「学術変革領域研究(A)(課題番号:JP21H05281)」、科学技術振興機構(JST)戦略的創造研究推進事業CREST(課題番号:JPMJCR23B6)、三菱財団「自然科学研究助成」、稲盛財団「InaRISフェローシップ」、武田科学振興財団「武田報彰医学研究助成」、「ライフサイエンス研究助成」などの支援により実施されました。
用語解説
- (注1)R2レトロトランスポゾン
RNAを介してゲノム上に自身のコピーを挿入する「動く遺伝子」(レトロトランスポゾン)の一種。28SリボソームDNAの特定の部位に挿入される特徴をもつ。 - (注2)リボソームDNA(rDNA)
リボソームRNAをコードするDNA領域。多くの真核生物では、ゲノム中に多数のコピーが存在する。R2レトロトランスポゾンをもつ生物では、28SリボソームDNAの一部のコピーにR2が挿入されている。 - (注3)標的始動型逆転写(TPRT)
標的DNAの切断によって生じた3′末端をプライマーとして、RNAを鋳型にDNAを合成する逆転写反応。R2の場合、R2タンパク質が標的DNAの一方の鎖に切れ目を入れ、生じた3′末端を起点として鋳型RNAを逆転写することで、DNAの挿入を開始する。 - (注4)ゲノム編集技術
生命の設計図であるゲノムDNAの塩基配列を、狙った位置で改変する技術。CRISPR-Cas9によるDNA切断を介した配列改変や、Cas9ニッカーゼと塩基修飾酵素を組み合わせた塩基置換に加え、近年ではDNA組換え酵素やR2などを用いた長鎖DNAの挿入も可能になってきている。 - (注5)CRISPR-Cas9
細菌の獲得免疫機構であるCRISPR-Casシステムの一種。Cas9タンパク質はガイドRNAと複合体を形成し、ガイドRNA中のガイド配列と相補的な配列をもつ標的二本鎖DNAを切断する。Cas9とガイドRNAの複合体をCRISPR-Cas9とよぶこともある。Cas9がもつ2つのDNA切断ドメイン(RuvCドメインとHNHドメイン)のうち、一方の切断活性を失わせる変異を導入し、二本鎖DNAの一方の鎖のみに切れ目(ニック)を入れるようにした酵素をCas9ニッカーゼとよぶ。ゲノム編集に広く用いられる化膿レンサ球菌由来のCas9(SpCas9)では、RuvCドメインにD10A変異、またはHNHドメインにH840A変異を導入することで、ニッカーゼを作製できる。 - (注6)ガイドRNA
Cas9と複合体を形成し、ガイド配列と相補的な配列をもつ標的DNAにCas9を導くRNA。ガイド配列を変えることで、Cas9の標的を指定できる。 - (注7)クライオ電子顕微鏡
試料を極低温に保ちながら電子線を照射し、観察する装置。タンパク質や核酸などを含む試料を急速凍結して撮影し、得られた画像を解析することで、分子の立体構造を決定できる。 - (注8)高速原子間力顕微鏡
微小な探針で試料の表面を高速になぞることにより、その形状や変化を画像化する顕微鏡。溶液中ではたらくタンパク質分子などの動きを捉えることができる。 - (注9)タンパク質言語モデル
大量のタンパク質のアミノ酸配列を学習した機械学習モデル。配列に含まれる特徴を捉え、アミノ酸置換がタンパク質の構造や機能に与える影響などの予測に利用される。 - (注10)ProteinMPNN
深層学習を用いて、与えられたタンパク質の立体構造に適したアミノ酸配列を設計する手法。タンパク質同士が結合する界面のアミノ酸配列の設計にも利用される。
関連情報
関連論文1:Fell CW, Villiger L, Lim J, Hiraizumi M, Tagliaferri D, Yarnall MTN, Lee A, Jiang K, Kayabolen A, Krajeski RN, Schmitt-Ulms C, Ramani H, Yousef SM, Roberts N, Vakulskas CA, Nishimasu H, Abudayyeh OO, Gootenberg JS. Reprogramming site-specific retrotransposon activity to new DNA sites. Nature 642, 1080–1089 (2025).
問合せ先
東京大学先端科学技術研究センター 構造生命科学分野
教授 西増 弘志(にします ひろし)
関連タグ
